紫茎泽兰种群空间遗传结构研究
2017-03-31 21:19:17杨林秀陈金龙王亚婷
绿色科技
2017年5期
杨林秀+陈金龙+王亚婷
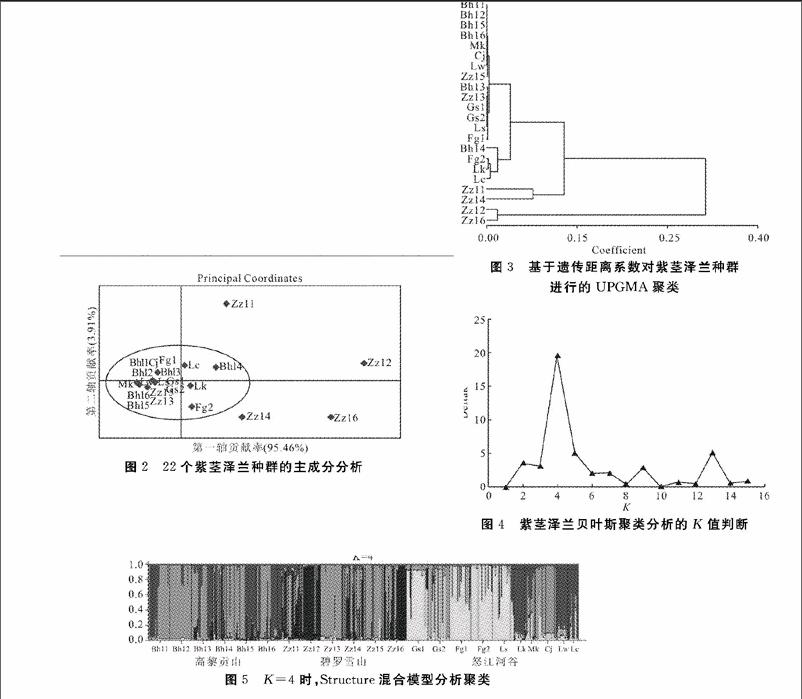
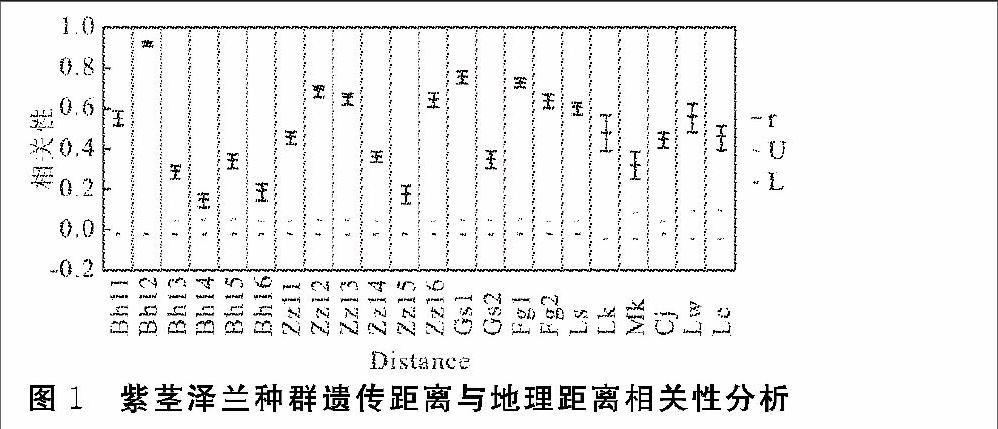
摘要:选取云南省境内怒江流域北段作为研究区域,采用SSR分子标记技术,对研究区域内的22个紫茎泽兰种群的遗传多样性和种群遗传结构进行了实验分析。实验从60对SSR引物中筛选出3对多态性引物进行扩增,采用0/1法读取条带。3对SSR引物一共扩增出136个条带,共检测到38个特异性条带,每对SSR引物检测出的多态性条带平均为12.6。采用GenAlEx 6.2、Structure2.3.3、NTSYS-PC软件进行分析,得出:22个紫茎泽兰种群间遗传多样性较高,种群水平上的多态位点百分率(P)为71.21% ,Shannon信息指数(I)为0.280,Nei基因多样性指数(H)为0.176,等位基因数(Na)为1.712,有效等位基因数(Ne)为1.280。通过UPGMA聚类和贝叶斯聚类分析均显示出三个区域的种群遗传差异。
关键词:紫茎泽兰;遗传结构;怒江;微卫星标记
中图分类号:S451
文献标识码:A文章编号:16749944(2017)05000905
1引言
紫茎泽兰(Ageratina adenophora R.M.King & H.Robinson),英文名Crofton weed,俗称解放草、霸王草、破坏草等,菊科(Compositae)紫茎泽兰属(Ageratina Spach)[《中国植物志》(第76卷第1分册)中曾置于泽兰属(Eupatorium Lin.),学名为Eupatorium coelestinum Lin.]的一种多年生丛生状亚灌木草本植物(King & Robinson,1970)[1,2]。紫茎泽兰是一种危害严重的世界性恶性杂草[3],20世纪中期该杂草由中缅边境传入我国云南南部,之后迅速扩散至西南及华南地区,并仍以每年几十公里的速度向内陆蔓延扩散,成为我国最为严重的入侵物种之一。
空间遗传结构决定了种群的适应能力和进化潜力[4],植物种群生存环境的差异导致了种群的特定空间遗传结构[5,6]。不同地区温度、湿度等条件不同,对植物产生的选择压力也将不同,这是导致植物遗传结构随地区变化的主要原因。……
登录APP查看全文